引言:研究问题与范围
在生命科学中,钙离子(Ca2+)具有双重身份:它既是细胞内广泛存在的离子,也是重要的细胞信号分子之一。需要首先明确的是,“钙”在不同语境下指代不同的区室,不能混为一谈 [1]。胞外钙:细胞外液中的 Ca2+,如培养液中人为调整的浓度,或组织间隙中的钙分布;胞质游离钙:静息状态下,许多细胞的胞质游离 Ca2+ 维持在约 100 nM 量级,与胞外 Ca2+ 浓度通常相差约四个数量级——这一巨大的浓度差是 Ca2+ 能够作为细胞信号的物理基础之一。细胞器钙储存:内质网、高尔基体等区室中储存的钙,可被释放并参与信号传递。胞质游离钙的变化可以在时间和空间上受到精细调控,并被多种 Ca2+ 结合蛋白、酶及信号网络转换为细胞反应,因此 Ca2+ 参与了神经传递、肌肉收缩、分泌调控、细胞分化等众多核心生命过程 [1–3]。
本文关心的问题是:这种普适性的细胞信号,在人体最大的器官——皮肤——中,如何参与表皮分化与屏障稳态的调节?表皮中存在与分层结构相关的钙分布(表皮钙梯度,Epidermal Calcium Gradient)。现有研究提示,这一分布与表皮分化、细胞连接以及屏障稳态相关过程存在密切联系。围绕这一命题,本文将依次梳理:钙信号研究的历史背景、表皮钙梯度的测量与分布、钙参与分化与屏障调节的实验证据、角质层主要组成及其与钙调控的联系,以及现有证据的局限。
需要预先说明:表皮中的钙以多种形式存在于多个区室,其测量结果依赖于具体技术手段;不同区室、受体与下游通路之间存在复杂的交叉与反馈。
研究背景:钙信号概念的确立
如果从今天理解 Ca2+ 信号所需的几个关键问题来看,20 世纪中后期的研究大致回答了三个层面的问题:Ca2+ 能否触发细胞反应、Ca2+ 变化能否被直接观测,以及细胞如何识别 Ca2+ 信号。
其一,钙作为触发变量。20 世纪中叶,Bernard Katz 及其同事通过神经肌肉接头的电生理研究发现,改变细胞外液 Ca2+ 条件会显著影响神经递质释放,而实验进一步提示 Ca2+ 的作用直接涉及递质释放过程,而非简单改变肌肉对递质的敏感性 [2,3]。这些研究确立了钙依赖性细胞应答的基本生理学框架。1970 年,Katz 因关于神经末梢递质储存、释放与失活机制的研究,与 Ulf von Euler 和 Julius Axelrod 共同获得诺贝尔生理学或医学奖。
其二,钙变化成为可观测变量。20 世纪 80 年代起,Roger Y. Tsien 等人通过 Ca2+ 螯合分子的设计与荧光基团改造,逐步建立并发展了荧光 Ca2+ 指示技术。1980 年,Tsien 提出基于高选择性 Ca2+ 螯合体系的荧光指示策略,为胞内 Ca2+ 的光学检测奠定了基础 [4]。1982 年,Tsien、Pozzan 和 Rink 进一步将荧光指示剂用于完整淋巴细胞中的胞质游离 Ca2+ 测量 [5]。1985 年,Grynkiewicz、Poenie 和 Tsien 发表了新一代具有更优荧光性质的 Ca2+ 指标,其中包括后来广泛使用的 Fura-2 体系 [6]。借助这些工具与数字成像技术,研究者得以在活细胞中定量观测胞质游离钙的时空变化 [6,7]。2008 年,Tsien 与 Osamu Shimomura、Martin Chalfie“因发现和发展绿色荧光蛋白(GFP)”共同获得诺贝尔化学奖。其中,Tsien 的主要贡献包括阐明 GFP 的荧光机制,并拓展荧光蛋白的颜色范围,使研究者能够利用不同颜色的荧光标记和追踪多种生物过程。需要指出的是,该诺贝尔奖表彰的是 GFP 相关研究,而非 Ca2+ 荧光指示剂研究。
其三,钙信号可以被特定分子系统感知。1992 年,Brose、Petrenko、Südhof 和 Jahn 报道 synaptotagmin 在带负电磷脂参与的条件下可结合 Ca2+,为其作为突触小泡胞吐过程钙感受器的作用提供了生化证据。并提出其作为 Ca2+ 感受蛋白的可能作用 [8]。2013 年,Südhof 与 James Rothman、Randy Schekman 因关于细胞囊泡运输及其调控机制的研究,共同获得诺贝尔生理学或医学奖。Südhof 的研究尤其阐明了神经递质释放过程中囊泡融合以及 Ca2+ 信号与胞吐机制之间的联系。
三类代表性研究进展的贡献可以概括为:Ca2+ 能够产生作用、其变化能够被观测、其信号能够被特定分子系统读取。这些概念构成了研究表皮钙问题的理论前提。
表皮钙梯度:测量、分布与区室
2.1 钙能够改变角质形成细胞的分化状态
Ca2+ 进入皮肤研究领域的经典起点,是 Hennings 等人 1980 年的工作:在培养的小鼠表皮细胞体系中,改变培养液中的离子钙浓度,可显著改变细胞的增殖与分化模式——钙浓度升高推动角质形成细胞从增殖状态走向分化 [9]。需要强调这项研究的实验背景:它是体外培养体系中的钙转换实验。它证明的是胞外钙浓度是角质形成细胞分化状态的重要调节因素,而不能直接外推为人体表皮中普遍发生的完整过程。
2.2 表皮中存在与分层相关的钙分布
在组织层面,表皮不同层次呈现出具有分层特征的 Ca2+ 分布。研究显示,正常表皮存在可重复观察到的分层相关 Ca2+ 分布。基底层与棘层钙水平较低,至颗粒层附近达到较高水平,进入角质层后下降。这一分布与表皮不同层次的细胞分化状态呈现空间上的对应关系。关于这一梯度的性质,2010 年的测量研究提示了一个重要的细节:Celli 等人利用荧光寿命成像(phasor 方法)对表皮钙梯度进行定量研究发现,实验测得的表皮游离钙信号中,相当一部分来自细胞内钙库,胞外钙对测量结果的直接贡献相对较小 [10]。因此,表皮钙梯度不能简单等同于胞外 Ca2+ 浓度梯度。现有研究提示,表皮中可检测到的游离 Ca2+ 信号包含重要的细胞内来源,因此组织层面的钙分布需要结合不同细胞区室和具体测量方法来理解。
2.3 表皮钙梯度与屏障状态的动态耦合
钙梯度获得功能意义的关键证据,来自它与屏障过程的耦合关系。在无毛小鼠实验中,研究者在未先行破坏屏障的条件下,选择性改变上部表皮的胞外 Ca2+ 分布,发现局部 Ca2+ 降低可加快层板小体分泌 [11]。这表明,表皮局部 Ca2+ 环境的变化能够直接影响与屏障形成相关的脂质分泌过程。与此同时,屏障受到急性破坏时,原有钙梯度会消失;随着屏障恢复,钙梯度也会重新出现 [12]。这组研究共同提示,表皮钙分布并非静态背景变量,而是与屏障状态存在动态耦合:一方面,局部 Ca2+ 分布变化可以影响部分屏障相关过程;另一方面,屏障状态的变化又与钙梯度的消失和恢复相伴随。
2.4 CaSR:胞外钙感知的重要机制之一
钙敏感受体(CaSR,Calcium Sensing Receptor)的研究为此提供了重要环节:Tu 等人建立的角质形成细胞特异性 CaSR 基因敲除小鼠研究显示,CaSR 缺失会导致表皮钙梯度受损、终末分化下降、层板小体数量与分泌减少、屏障功能减弱 [13]。需要明确这项证据的边界:其一,这是特定物种、特定细胞类型、特定基因敲除条件下的研究,相关表型还受动物年龄与膳食钙条件影响;其二,它支持的是“CaSR 对正常表皮分化与屏障稳态具有重要作用”,而不能推出 CaSR 是表皮钙作用的唯一入口,也不能推出所有梯度效应都经过同一条通路。CaSR 是角质形成细胞重要的胞外 Ca2+ 感知机制之一,而非全部。
表皮分化进程与钙环境的对应关系
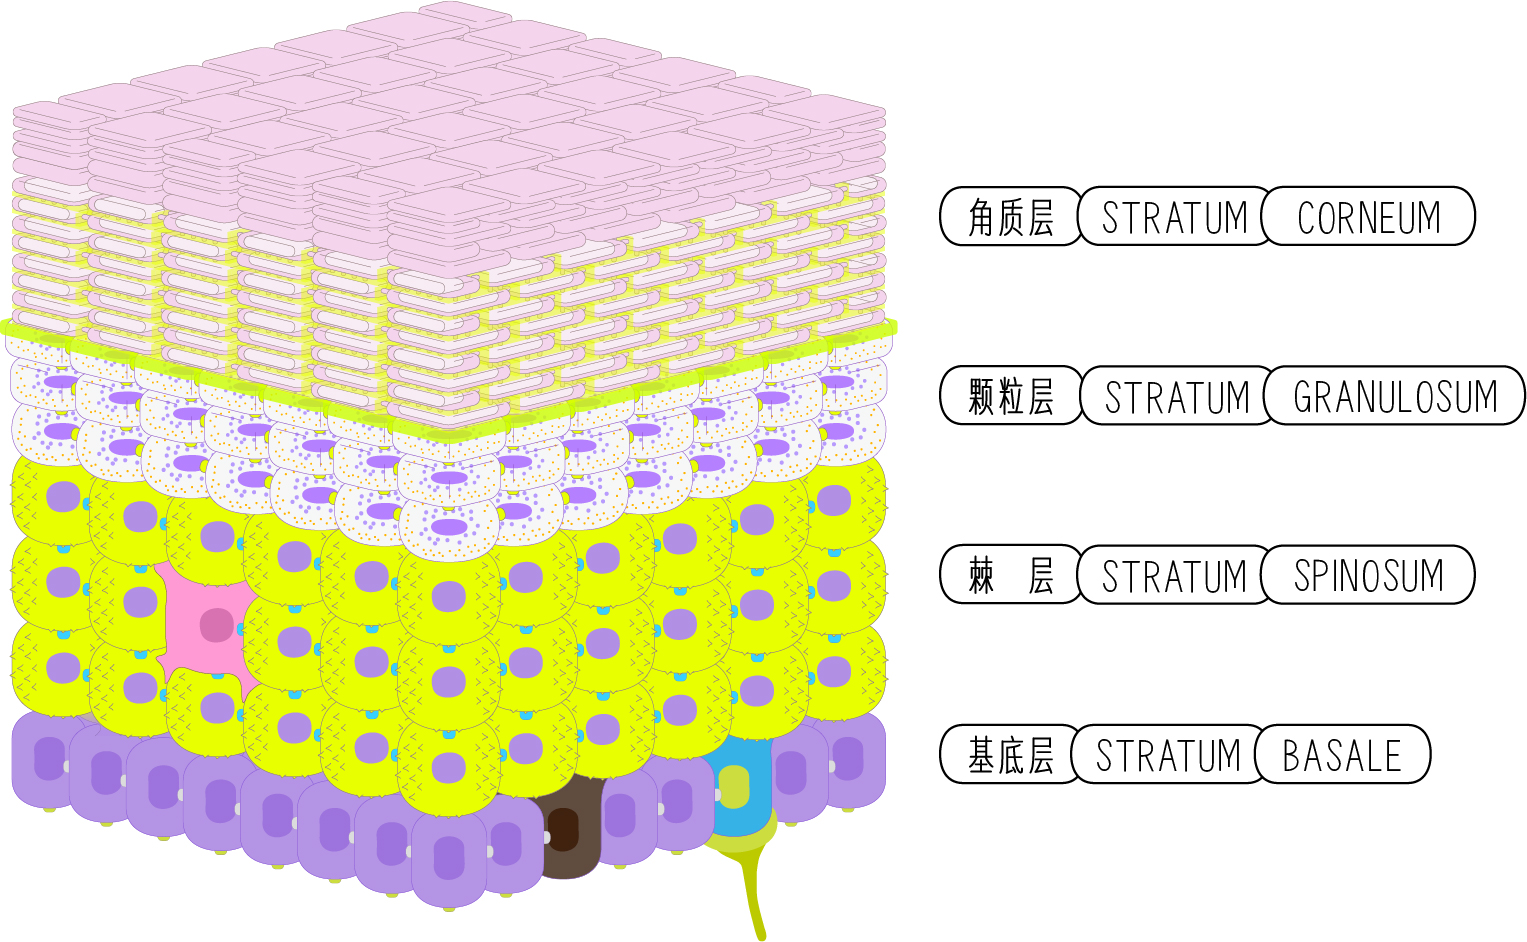
表皮通常可分为基底层、棘层、颗粒层和角质层;在厚表皮中,颗粒层与角质层之间还可见透明层,表皮处于持续更新之中:角质形成细胞在基底层增殖,随后逐渐向表面迁移并完成终末分化,最终形成角质层并脱落。这种空间分布与表皮不同层次的分化状态存在对应关系——随细胞向上迁移,表皮 Ca2+ 分布发生层次性变化,在颗粒层附近达到较高水平,进入角质层后再次下降。需要说明的是,表皮的增殖、分化与结构形成受到多种信号系统(包括但不限于钙信号)的共同调节,各层次的生理特征是多因素协同的结果;以下描述着眼于其中与钙相关的部分。
3.1 基底层:增殖与更新的主要区域
基底层位于表皮最深处,处于相对较低的钙环境中,是正常表皮角质形成细胞增殖的主要区域。基底层通过有丝分裂不断产生新生细胞。研究显示,表皮干细胞的增殖、分化取向与分裂方式受到多种信号的共同调节:其中,Lechler 与 Fuchs 的研究提供了不对称细胞分裂参与哺乳动物皮肤分层和分化的重要证据 [14]。至于 p63、Wnt、Notch、细胞黏附以及 Ca2+ 信号之间的具体关系,则涉及不同实验体系和发育阶段,不能简单归纳为一条固定通路。分裂取向与子细胞命运之间的关系受到发育阶段、组织部位和实验模型影响,不能直接推广为成年表皮更新的统一模式。在结构层面,基底层细胞通过多种连接方式形成稳固的组织网络:黏着连接:由钙黏蛋白 E-cadherin 及相关连环蛋白等组成,维持细胞间黏附,并参与与细胞分化相关的信号调节 [15];桥粒连接:由桥粒斑蛋白(DSP)、桥粒黏蛋白(DSG)、桥粒芯蛋白(DSC)等装配形成,锚定相邻细胞的细胞骨架,提供抵抗拉伸与摩擦的结构强度;缝隙连接:由连接蛋白构成的细胞间通道,实现离子与小分子的交换,参与细胞群体的代谢与信号同步;半桥粒连接:由整合素(如 α6β4)介导、连接角质形成细胞与基底膜的结构,将表皮锚定于真皮。
3.2 棘层:分化启动与结构蛋白表达
当新生细胞从基底层向棘层迁移,其所处的表皮 Ca2+ 环境也随空间位置发生变化。局部胞外 Ca2+ 水平的变化可以通过 CaSR 等机制引发胞内 Ca2+ 变化,并进一步通过 PLC、IP3/DAG、PKC 等相关信号网络参与角质形成细胞分化调节 [15]。这些通路彼此存在交叉,并不构成适用于所有表皮分化阶段的固定线性通路。随着分化推进,角质形成细胞逐步表达不同的结构蛋白。棘层阶段可见分化相关角蛋白以及 involucrin 等蛋白的表达,进一步进入颗粒层阶段后,profilaggrin 等晚期分化相关蛋白更加突出 [15]。与此同时,棘层细胞逐步建立和重塑多种细胞间连接,包括黏着连接和桥粒连接,为表皮细胞之间的机械连接与组织完整性提供基础。
3.3 颗粒层:终末分化与屏障物料准备
颗粒层附近的钙水平达到梯度中的较高值。在颗粒层进一步推进终末分化,其核心工作包括物料准备、边界构建与连接转型三个方面。
其一,屏障物料的加工与准备。丝聚蛋白前体的加工:颗粒层细胞中可见富含 profilaggrin 的透明角质颗粒(keratohyalin granules)。需要区分丝聚蛋白的两个加工阶段:第一阶段,Profilaggrin 在终末分化过程中被加工形成 Filaggrin 重复单元;随后,Filaggrin 在角质层中进一步发生蛋白水解,产生游离氨基酸及其衍生物,其中部分参与天然保湿因子(NMF)形成。Hoste 等发现,Caspase-14 缺失并不阻止 profilaggrin 向功能性 Filaggrin 重复单元的加工,但会影响后续 Filaggrin 降解并导致 NMF 减少 [16]——即 Caspase-14 主要参与后续降解环节,而非前体的初始切割。层板小体脂质的运输与分泌:屏障脂质在角质形成细胞内经多种途径合成,并通过细胞内运输系统进入层板小体。以 ABCA12 为例,Sakai 等的研究发现,ABCA12 与葡糖基神经酰胺在颗粒层角质形成细胞的高尔基体及层板小体中存在相关定位,并提示 ABCA12 参与脂质由高尔基体向层板小体的运输 [17]。层板小体随后通过胞吐,将其中的脂质成分释放至细胞间隙。角质包膜前体的交联准备:involucrin、loricrin 等结构蛋白在颗粒层大量表达,角质包膜相关蛋白在分化过程中陆续表达,并在向角化状态过渡时,经包括转谷氨酰胺酶 1 在内的酶参与交联,逐步形成和完善角质包膜 [20]。
其二,屏障边界的构建。颗粒层中的紧密连接由 claudin、occludin、JAM 和 ZO 等相关蛋白组成,是表皮重要的旁细胞屏障结构之一,可限制细胞间通路中的分子和离子通透。关于紧密连接与钙分布的关系,Kurasawa 等利用重建人表皮的研究表明:扰动紧密连接可改变表皮钙通量、钙分布及分化状态,提示紧密连接参与表皮钙梯度的维持 [18]。需要说明的是,现有证据支持的是紧密连接通过限制旁细胞通透性、参与钙分布及屏障稳态的维持;至于钙在紧密连接阻隔下的具体跨层传递路径(经细胞内或经其他途径),仍是活跃的研究问题,尚不宜作排他性结论。
其三,连接转型与形态变化。随细胞向上迁移,细胞间连接的分子组成和结构也发生重组;进入角质层后,部分桥粒进一步转化为角质桥粒,并参与后续的角质层黏附与脱屑过程。
3.4 角质层:终末分化结构与脱屑调控
进入角质层后,细胞完成终末分化,形成由失去细胞核和大部分细胞器的角质细胞构成的结构。角质层由角质细胞与细胞间脂质共同构成,其具体组成与结构详见第五章。角质层的维持还涉及角质桥粒的降解与持续脱屑。角质桥粒连接相邻角质细胞,为角质层提供细胞间黏附;随着细胞逐渐接近角质层表面,KLK5、KLK7、KLK14 等丝氨酸蛋白酶参与角质桥粒相关蛋白的降解,从而促进角质细胞的有序脱落。脱屑并非由单一因素决定,而是受到蛋白酶、蛋白酶抑制剂以及局部微环境等多种因素共同调节。Deraison 等的研究表明,LEKTI 可特异性抑制 KLK5、KLK7 和 KLK14,其抑制作用受到局部 pH 变化调节;随着角质层环境逐渐酸化,部分 KLK 与 LEKTI 的结合减弱,使蛋白酶活性增加,从而促进角质桥粒的降解和表层角质细胞的脱落 [19]。
Ca2+ 参与表皮稳态的机制网络
综合第二章、第三章的证据,可以从几个相互关联的层级理解 Ca2+ 参与表皮分化和屏障稳态调节的过程。钙环境:表皮不同层次具有不同的 Ca2+ 分布,为角质形成细胞提供与空间位置和分化状态相关的离子环境。感知:CaSR 等机制能够感知胞外 Ca2+ 变化,并影响角质形成细胞内的 Ca2+ 信号和分化过程 [13,15]。胞内信号:胞外 Ca2+ 变化可通过 CaSR、PLC、IP3/DAG、PKC 等信号网络,引起胞内 Ca2+ 动态及相关下游反应 [15]。细胞与组织反应:这些信号与细胞黏附、分化相关蛋白表达、层板小体分泌等过程相互联系,并最终参与表皮结构和屏障功能的形成 [11–13,15,18]。需要特别说明:上述机制框架主要用于梳理不同层级之间的关系,各环节存在交叉和反馈,并不代表单一线性的信号通路。
角质层的主要组成及其与钙调控的联系
经典皮肤科学采用“砖与灰浆模型”(Brick and Mortar Model)解释角质层屏障:角质细胞为“砖”,细胞间脂质为“灰浆”。随着表皮生物学研究深入,屏障的形成被认识到远比“砖”和“灰浆”的静态二分更为复杂——角质形成细胞在不同分化阶段依次建立细胞骨架、角质包膜、脂质包膜、细胞间脂质与细胞连接等结构,这些结构的形成受包括钙信号在内的多种因素调控。在此基础上,可将角质层的组成拆解为五类相互协作的功能单元:
| 组成单元 | 对应结构 | 主要功能 | 与钙相关研究的联系 | |
|---|---|---|---|---|
| 砖芯 | 角质细胞内部结构 | 角蛋白骨架、丝聚蛋白及 NMF 相关组分 | 提供细胞内部结构,并参与角化过程 | 角质形成细胞分化及相关蛋白表达受 Ca2+ 信号参与调节 [9,13,15] |
| 砖壳 | 角质包膜 | Cornified Envelope, CE | 形成角质细胞外围的稳定蛋白结构 | 包膜蛋白表达与终末分化相关,Ca2+ 参与分化调节 [13,15] |
| 砖面 | 角质细胞脂质包膜 | Corneocyte Lipid Envelope, CLE | 构成角质细胞表面的脂质界面,并与细胞间脂质层相接 | 与终末分化和脂质加工过程相关 |
| 灰浆 | 细胞间脂质层 | 神经酰胺、胆固醇、游离脂肪酸等 | 构成重要的通透性屏障 | 层板小体分泌可受上层表皮胞外 Ca2+ 状态影响 [11] |
| 钢筋 | 角质桥粒 | Corneodesmosomes | 维持角质细胞间连接并参与脱屑 | 脱屑主要受 KLK–LEKTI–pH 等系统调控 [19];Ca2+ 的具体作用位点尚不明确 |
这一拆解说明的是:屏障的各组成单元在形成过程上前后衔接,且多项环节与钙信号存在联系——但如第四章所述,这是多因素参与、存在交叉反馈的调节网络,而非单一线性指令的依次执行。
钙分布的双重角色
在这一框架下,表皮钙分布具有两个彼此衔接的层面:一方面,Ca2+ 参与角质形成细胞的分化调节。体外培养研究和体内 CaSR 缺失模型均支持 Ca2+ 状态与角质形成细胞分化过程存在联系 [9,13]。另一方面,它响应组织状态。屏障受到急性破坏后,原有钙分布会消失或明显改变;随着屏障恢复,钙分布重新出现。Elias 等人的实验进一步表明,屏障状态本身可以调节钙分布的形成与恢复 [12]。这提示表皮 Ca2+ 分布与屏障状态之间存在动态耦合,而不是单向的因果关系。
结论
现有研究支持:Ca2+ 信号及表皮钙分布参与角质形成细胞分化、细胞连接和屏障稳态的调节。从基础生命科学确立 Ca2+ 作为重要的细胞信号,到皮肤科学逐步发现表皮 Ca2+ 分布与角质形成细胞分化、屏障状态之间的关系,再到 CaSR 等感知系统的机制支撑(Tu 等)——这些研究从不同层面逐步建立了 Ca2+ 与表皮分化、细胞连接及屏障状态之间的实验联系。但同样需要明确:不同钙区室、受体及下游通路之间存在复杂联系,其作用受到组织状态与实验条件影响。就现有证据而言,尚不宜将表皮钙的作用归纳为支配全部屏障结构的单一线性指令链。
主要参考文献
- Berridge MJ, Lipp P, Bootman MD. The versatility and universality of calcium signalling. Nat Rev Mol Cell Biol. 2000;1:11–21. DOI: 10.1038/35036035.
- Katz B, Miledi R. The effect of calcium on acetylcholine release from motor nerve terminals. Proc R Soc Lond B. 1965;161:496–503. DOI: 10.1098/rspb.1965.0017.
- Katz B, Miledi R. The timing of calcium action during neuromuscular transmission. J Physiol. 1967;189(3):535–544. DOI: 10.1113/jphysiol.1967.sp008183.
- Tsien RY. New calcium indicators and buffers with high selectivity against magnesium and protons. Biochemistry. 1980;19(11):2396–2404. DOI: 10.1021/bi00552a018.
- Tsien RY, Pozzan T, Rink TJ. Calcium homeostasis in intact lymphocytes: cytoplasmic free calcium monitored with a new, intracellularly trapped fluorescent indicator. J Cell Biol. 1982;94(2):325–334. DOI: 10.1083/jcb.94.2.325.
- Grynkiewicz G, Poenie M, Tsien RY. A new generation of Ca2+ indicators with greatly improved fluorescence properties. J Biol Chem. 1985;260(6):3440–3450. DOI: 10.1016/S0021-9258(19)83641-4.
- Williams DA, Fogarty KE, Tsien RY, Fay FS. Calcium gradients in single smooth muscle cells revealed by the digital imaging microscope using Fura-2. Nature. 1985;318:558–561. DOI: 10.1038/318558a0.
- Brose N, Petrenko AG, Südhof TC, Jahn R. Synaptotagmin: a calcium sensor on the synaptic vesicle surface. Science. 1992;256:1021–1025. DOI: 10.1126/science.1589771.
- Hennings H, Michael D, Cheng C, Steinert P, Holbrook K, Yuspa SH. Calcium regulation of growth and differentiation of mouse epidermal cells in culture. Cell. 1980;19:245–254. DOI: 10.1016/0092-8674(80)90406-7.
- Celli A, Sanchez S, Behne M, Hazlett T, Gratton E, Mauro T. The epidermal Ca2+ gradient: Measurement using the phasor representation of fluorescent lifetime imaging. Biophys J. 2010;98(5):911–921. DOI: 10.1016/j.bpj.2009.10.055.
- Menon GK, Price LF, Bommannan B, Elias PM, Feingold KR. Selective obliteration of the epidermal calcium gradient leads to enhanced lamellar body secretion. J Invest Dermatol. 1994;102(5):789–795. DOI: 10.1111/1523-1747.ep12377921.
- Elias PM, Ahn SK, Brown BE, Crumrine D, Feingold KR. Origin of the epidermal calcium gradient: regulation by barrier status and role of active vs passive mechanisms. J Invest Dermatol. 2002;119(6):1269–1274. DOI: 10.1046/j.1523-1747.2002.19622.x.
- Tu CL, Crumrine DA, Man MQ, Chang W, Elalieh H, You M, Elias PM, Bikle DD. Ablation of the calcium-sensing receptor in keratinocytes impairs epidermal differentiation and barrier function. J Invest Dermatol. 2012;132(10):2350–2359. DOI: 10.1038/jid.2012.159.
- Lechler T, Fuchs E. Asymmetric cell divisions promote stratification and differentiation of mammalian skin. Nature. 2005;437(7056):275–280. DOI: 10.1038/nature03922.
- Bikle DD, Xie Z, Tu CL. Calcium regulation of keratinocyte differentiation. Expert Rev Endocrinol Metab. 2012;7(4):461–472. DOI: 10.1586/eem.12.34.
- Hoste E, Kemperman P, Devos M, et al. Caspase-14 is required for filaggrin degradation to natural moisturizing factors in the skin. Journal of Investigative Dermatology. 2011;131:2233–2241. DOI: 10.1038/jid.2011.153.
- Sakai K, Akiyama M, Sugiyama-Nakagiri Y, McMillan JR, Sawamura D, Shimizu H. Localization of ABCA12 from the Golgi apparatus to lamellar granules in human upper epidermal keratinocytes. Experimental Dermatology. 2007;16:920–926. DOI: 10.1111/j.1600-0625.2007.00614.x.
- Kurasawa M, Maeda T, Oba A, Yamamoto T, Sasaki H. Tight junction regulates epidermal calcium ion gradient and differentiation. Biochem Biophys Res Commun. 2011;406(4):506–511. DOI: 10.1016/j.bbrc.2011.02.057.
- Deraison C, Bonnart C, Lopez F, et al. LEKTI fragments specifically inhibit KLK5, KLK7, and KLK14 and control desquamation through a pH-dependent interaction. Molecular Biology of the Cell. 2007;18:3607–3619. DOI: 10.1091/mbc.E07-02-0124.
- Steinert PM, Marekov LN. Initiation of assembly of the cell envelope barrier structure of stratified squamous epithelia. Mol Biol Cell. 1999;10(12):4247–4261. DOI: 10.1091/mbc.10.12.4247. PMID: 10588656.